Nội dung chính
- Đặt vấn đề
Sự thụ tinh bình thường đánh dấu thời điểm khởi đầu của quá trình phát triển phôi, nhưng không bảo đảm rằng phôi sẽ tiếp tục phân chia và hình thành phôi nang. Trong nuôi cấy in vitro, một tỷ lệ đáng kể phôi có hai tiền nhân vẫn ngừng phát triển trước khi đạt đến giai đoạn phôi nang. Hiện tượng này có thể liên quan đến nhiều yếu tố, từ chất lượng giao tử, khả năng hoạt hóa bộ gen phôi đến những bất thường phát sinh trong quá trình phân chia tế bào. Trong đó, sai sót nguyên phân là một cơ chế đáng chú ý vì có thể làm thay đổi vật chất di truyền của các phôi bào ngay sau thụ tinh[1].
Khác với bất thường nhiễm sắc thể xuất phát từ giảm phân của giao tử, sai sót nguyên phân xảy ra sau thụ tinh, khi phôi bắt đầu nhân đôi và phân bố bộ gen cho các tế bào con. Một hợp tử có bộ nhiễm sắc thể ban đầu bình thường vẫn có thể tạo ra các phôi bào mang số lượng hoặc cấu trúc nhiễm sắc thể khác nhau. Nếu sai sót ảnh hưởng đến nhiều nhiễm sắc thể hoặc lặp lại qua các lần phân chia, khả năng duy trì sự phát triển của phôi có thể bị suy giảm đáng kể. Tuy nhiên, không phải mọi bất thường nguyên phân đều khiến phôi ngừng phát triển tức thời[1,2].
- Các dạng sai sót nguyên phân trong giai đoạn phân chia sớm
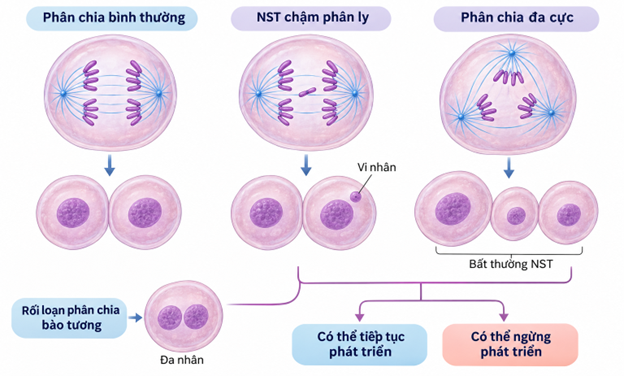
Nhiễm sắc thể chậm phân ly là hiện tượng một hoặc một số nhiễm sắc thể còn nằm giữa hai nhóm nhiễm sắc thể đang di chuyển về hai cực ở kỳ sau. Nguyên nhân thường được đề xuất là sự gắn kết không phù hợp giữa tâm động và vi ống, khiến một nhiễm sắc thể chịu lực kéo từ cả hai phía. Nhiễm sắc thể chậm phân ly có thể đi vào một trong hai nhân con, bị phân bố sai hoặc tồn tại bên ngoài nhân chính dưới dạng vi nhân. Currie và cộng sự (2022) đã quan sát trực tiếp những hiện tượng này trong lần nguyên phân đầu tiên của phôi người[2].
Cầu nhiễm sắc thể xuất hiện khi vật chất nhiễm sắc vẫn nối hai khối nhiễm sắc thể đang tách xa nhau. Hiện tượng này có thể liên quan đến DNA chưa được sao chép hoặc tháo gỡ hoàn chỉnh, sự kết nối bất thường giữa các nhiễm sắc thể hay những tổn thương DNA trước phân chia. Cầu nhiễm sắc thể có nguy cơ bị kéo đứt khi tế bào tiếp tục phân chia, từ đó làm tăng bất ổn bộ gen. Cần phân biệt cầu nhiễm sắc thể với nhiễm sắc thể chậm phân ly: một bên là cấu trúc kéo dài nối hai khối, bên còn lại là nhiễm sắc thể còn sót ở vùng giữa. Mức độ đóng góp riêng của cầu nhiễm sắc thể vào hiện tượng phôi người ngừng phát triển vẫn chưa được định lượng đầy đủ.
Phân chia đa cực xảy ra khi nhiễm sắc thể được kéo về hơn hai cực thay vì hai cực đối diện. Kết quả có thể là sự xuất hiện của ba hoặc nhiều nhóm nhiễm sắc thể, đi kèm phân bố vật chất di truyền không cân bằng. Trên hình ảnh nuôi cấy, một biểu hiện có thể gặp là hợp tử phân chia trực tiếp từ một thành ba phôi bào. Tuy vậy, hình thái phân chia trực tiếp không tự nó chứng minh sự tồn tại của thoi phân bào ba cực, vì rối loạn phân chia bào tương cũng có thể tạo ra kiểu hình tương tự[1,2].
Bất thường còn xảy ra ở phân chia bào tương. Rãnh phân chia có thể hình thành không đúng vị trí, bị thoái lui hoặc không tách hết tế bào mẹ. Khi đó, phôi bào có thể chứa hai nhân, nhiều nhân hoặc thậm chí không có nhân. Trong nghiên cứu quan sát time-lapse năm 2025, Akizawa và cộng sự ghi nhận các biến động bất thường của rãnh phân chia tạo ra tế bào hai nhân và không nhân, đồng thời quan sát những tế bào có tiến trình nguyên phân rối loạn đi kèm hiện tượng tạo bóng màng và phân mảnh[3]. Điều này cho thấy hình thái bất thường sau phân chia có thể phản ánh những sai lệch khác nhau ở cấp độ tế bào.
- Những cơ chế có thể dẫn đến sai sót phân chia
Một nguyên phân chính xác đòi hỏi DNA được nhân đôi đầy đủ trước khi nhiễm sắc thể phân ly. Nếu quá trình sao chép gặp trở ngại, các vùng DNA chưa hoàn tất có thể làm tăng nguy cơ đứt gãy hoặc tạo cầu nhiễm sắc thể ở kỳ sau. Rối loạn sửa chữa tổn thương DNA cũng có thể làm giảm tính toàn vẹn bộ gen trước lần phân chia tiếp theo. Đây là những cơ chế hợp lý về mặt sinh học tế bào, nhưng việc xác định chính xác từng tổn thương DNA dẫn đến ngừng phát triển ở một phôi người cụ thể vẫn là thách thức. Không nên mặc nhiên xem mọi trường hợp phôi chậm phân chia là hậu quả của stress sao chép.
Tổ chức thoi phân bào là mắt xích quan trọng thứ hai. Các vi ống phải tiếp cận và gắn chính xác vào nhiễm sắc thể, trong khi vị trí hai cực thoi phân bào cần được duy trì ổn định. Nếu bộ máy này bị lệch hướng, nhiễm sắc thể có thể không hội tụ đầy đủ về hai cực hoặc bị phân bố theo nhiều hướng. Năm 2022, Currie và cộng sự ghi nhận lần nguyên phân đầu tiên của phôi người kéo dài và dễ xuất hiện các biểu hiện liên quan đến phân ly nhiễm sắc thể sai lệch. Tuy nhiên, số phôi được quan sát time-lapse còn hạn chế nên không thể suy rộng tần suất quan sát thành tỷ lệ chính xác cho mọi chu kỳ IVF[2].
Mối liên hệ giữa động học phân chia và kết quả phát triển được làm rõ hơn trong nghiên cứu của Porokh và cộng sự (2024). Nhóm tác giả phân tích hình ảnh time-lapse của 300 phôi dẫn đến trẻ sinh sống, 207 phôi cùng chu kỳ ngừng phát triển trong giai đoạn phân chia và 111 phôi không làm tổ. Kiểu phân chia có hướng vuông góc với trục nối hai tiền nhân xuất hiện thường gặp ở nhóm sinh sống. Ngược lại, kiểu phân chia song song gặp nhiều hơn trong nhóm ngừng phát triển, với tỷ lệ tương ứng 3,7% và 14,9%. Dữ liệu này gợi ý vai trò của định hướng phân chia, nhưng chưa chứng minh trực tiếp rằng thay đổi góc thoi phân bào là nguyên nhân gây ngừng phát triển[4].
Các nghiên cứu mới tiếp tục cho thấy sai sót nguyên phân không chỉ giới hạn ở lần phân chia đầu tiên. Vasilev và cộng sự (2026) sử dụng ghi hình huỳnh quang trực tiếp trên 91 phôi người hiến cho nghiên cứu, ghi nhận bất thường phân ly nhiễm sắc thể ở cả giai đoạn ngày 2–3 và ngày 5. Abdelbaki và cộng sự (2026) cũng quan sát sự phân bố sai nhiễm sắc thể tại phôi nang, bao gồm nhiễm sắc thể chậm phân ly và thoi phân bào đa cực[5,6]. Những kết quả này mở rộng cách nhìn về bất ổn nguyên phân: sai sót có thể tiếp tục phát sinh khi phôi đã vượt qua các lần phân chia sớm, thay vì chỉ để lại hậu quả từ hợp tử.
- Từ sai sót nguyên phân đến phôi ngừng phát triển
Hậu quả dễ nhận thấy nhất của sai sót nguyên phân là bất thường số lượng nhiễm sắc thể xuất hiện sau thụ tinh. Khi các phôi bào nhận lượng vật chất di truyền không giống nhau, phôi có thể hình thành thể khảm nhiễm sắc thể. Một số dòng tế bào vẫn giữ bộ nhiễm sắc thể bình thường, trong khi các dòng khác mang bất thường. Nếu nhiều nhiễm sắc thể cùng bị ảnh hưởng, các tế bào con có thể thiếu hoặc thừa lượng lớn thông tin di truyền, gây rối loạn biểu hiện gen và làm giảm khả năng tiếp tục phân chia. Mức độ ảnh hưởng phụ thuộc vào loại sai sót, tỷ lệ tế bào bị ảnh hưởng và thời điểm phát sinh[1,2].
Bằng chứng đáng chú ý được McCoy và cộng sự công bố năm 2023. Khi phân tích các mẫu phôi ngừng phát triển và mẫu sinh thiết phôi nang, nhóm nghiên cứu ghi nhận bất thường nhiễm sắc thể ở 94% phôi ngừng phát triển, so với 69% phôi nang được xét nghiệm. Các bất thường được suy luận có nguồn gốc nguyên phân, đặc biệt khi liên quan đến nhiều nhiễm sắc thể, hiện diện nổi bật trong nhóm ngừng phát triển. Ở tập dữ liệu 843 phôi có ghi hình time-lapse, tỷ lệ mang bất thường nhiễm sắc thể nguồn gốc nguyên phân được ghi nhận là 51% ở nhóm phân chia bất thường, so với 23% ở nhóm có kiểu phân chia bình thường[1].
Đây không phải tỷ lệ phôi ngừng phát triển do sai sót nguyên phân trong toàn bộ quần thể IVF. Cách xác định nguồn gốc bất thường nhiễm sắc thể dựa một phần trên mẫu hình kết quả giải trình tự, thay vì theo dõi trực tiếp toàn bộ nhiễm sắc thể của từng phôi. Thiết kế quan sát cũng không cho phép quy một bất thường đơn lẻ là nguyên nhân chắc chắn gây ngừng phát triển. Dù vậy, sự khác biệt lớn giữa các nhóm hỗ trợ giả thuyết rằng sai sót nguyên phân nặng là một thành phần quan trọng của thất bại phát triển phôi[1].
Vi nhân là biểu hiện khác cho thấy mối liên hệ giữa phân ly nhiễm sắc thể và bất ổn bộ gen. Khi một nhiễm sắc thể chậm phân ly không được đưa vào nhân chính, nó có thể được bao bọc bởi một màng nhân riêng. Vật chất di truyền trong vi nhân dễ chịu tác động của quá trình sao chép và duy trì cấu trúc nhân bất thường. Tuy nhiên, chỉ nhìn thấy vi nhân không đủ để kết luận nhiễm sắc thể bên trong đã bị mất, đứt gãy hay chắc chắn làm phôi ngừng phát triển. Nghiên cứu ghi hình năm 2026 còn cho thấy vi nhân có thể được phân bố qua các lần phân chia theo những cách không điển hình, làm cho số phận của vật chất di truyền này phức tạp hơn một mô hình mất nhiễm sắc thể đơn giản[5].
Mối liên hệ giữa đa nhân và năng lực phát triển cũng không tuyệt đối. Trong nghiên cứu của Porokh và cộng sự (2024), tỷ lệ phôi có biểu hiện đa nhân ở giai đoạn hai tế bào là 82,9% ở nhóm ngừng phát triển, nhưng vẫn đạt 50,7% ở nhóm dẫn đến trẻ sinh sống. Trong nhóm sinh sống, tỷ lệ ghi nhận đa nhân giảm còn 8,3% ở giai đoạn bốn tế bào[4]. Kết quả này cho thấy một hình thái bất thường ở thời điểm sớm không nhất thiết tồn tại ở các lần phân chia tiếp theo. Cũng không thể từ đó kết luận phôi đã tự sửa chữa hoàn toàn các bất thường di truyền, bởi sự thay đổi hình thái nhân không đồng nghĩa với xác nhận bộ nhiễm sắc thể trở về bình thường.
Các kết quả trên gợi ý rằng phôi có nhiều con đường phát triển sau sai sót nguyên phân. Một số phôi có thể tiếp tục phân chia dù mang các dòng tế bào khác nhau, một số khác giảm tốc độ phát triển, tạo nhiều mảnh vỡ hoặc ngừng ở những giai đoạn tiếp theo. Khả năng loại bỏ tế bào bất thường, duy trì các dòng tế bào còn chức năng hoặc vượt qua một rối loạn thoáng qua được thảo luận như những khả năng sinh học, nhưng chưa thể dự đoán chắc chắn ở từng phôi người. Do đó, sai sót nguyên phân cần được xem là một yếu tố nguy cơ có sức ảnh hưởng khác nhau, không phải dấu hiệu đồng nghĩa với thất bại không thể đảo ngược.
- Ý nghĩa đối với đánh giá phôi trong labo IVF
Hệ thống time-lapse bổ sung chiều thời gian cho đánh giá hình thái. Việc quan sát liên tục giúp nhận diện phân chia trực tiếp, diễn tiến tạo rãnh phân chia, sự xuất hiện rồi biến mất của các cấu trúc nhân và những lần phân chia có trình tự không điển hình. Đây là lợi thế so với ghi nhận một ảnh tĩnh ở ngày 2 hoặc ngày 3. Tuy nhiên, time-lapse ánh sáng truyền qua không thay thế được kỹ thuật ghi hình huỳnh quang chuyên biệt để theo dõi nhiễm sắc thể, cũng không xác định trực tiếp tình trạng nguyên bội hay lệch bội của phôi[2,3,7].
Lợi ích nghiên cứu của time-lapse cũng cần được phân biệt với hiệu quả lâm sàng. Trong thử nghiệm ngẫu nhiên đa trung tâm công bố năm 2024 với 1.575 người tham gia, tỷ lệ trẻ sinh sống ở nhóm sử dụng hệ thống time-lapse để nuôi cấy và lựa chọn phôi là 33,7%, so với 33,0% ở nhóm chăm sóc chuẩn; sự khác biệt không có ý nghĩa thống kê[7]. Kết quả này không phủ nhận giá trị của time-lapse trong theo dõi hoặc lưu trữ diễn tiến phôi, nhưng cho thấy việc có thêm dữ liệu hình ảnh không tự động chuyển thành cải thiện kết cục trẻ sinh sống.
Từ góc độ quản lý chất lượng, ghi nhận rõ thời điểm và đặc điểm phân chia bất thường có thể hỗ trợ trao đổi chuyên môn, rà soát các trường hợp phôi ngừng phát triển và xây dựng bộ dữ liệu theo dõi tại labo. Nếu sử dụng time-lapse, cần thống nhất định nghĩa các hiện tượng như phân chia trực tiếp, đa nhân và phân chia bào tương không hoàn chỉnh, đồng thời đánh giá mức độ phù hợp giữa các người quan sát. Khuyến nghị thực hành tốt của ESHRE nhấn mạnh việc lựa chọn thông số có cơ sở khoa học, đào tạo nhân sự và kiểm soát chất lượng khi đưa công nghệ này vào quy trình[8].
- Kết luận
Sai sót nguyên phân góp phần hình thành bất thường nhiễm sắc thể và có liên quan chặt chẽ đến hiện tượng phôi ngừng phát triển trước làm tổ. Nhiễm sắc thể chậm phân ly, phân chia đa cực hoặc rối loạn phân chia bào tương có thể tạo vi nhân, đa nhân và những dòng phôi bào mang vật chất di truyền khác nhau. Tuy nhiên, một số phôi có biểu hiện bất thường ở giai đoạn sớm vẫn tiếp tục phát triển và dẫn đến trẻ sinh sống. Bởi vậy, trong labo IVF, cần đánh giá dấu hiệu phân chia trong toàn bộ diễn tiến phát triển, tránh xem một biểu hiện hình thái đơn lẻ là bằng chứng chắc chắn về bất thường di truyền hay tiêu chí loại phôi. Các nghiên cứu ghi hình trực tiếp đang giúp giải thích cơ chế ngừng phát triển, nhưng việc chuyển những hiểu biết này thành công cụ dự đoán đáng tin cậy vẫn cần thêm bằng chứng.
- McCoy RC, Summers MC, McCollin A, Ottolini CS, Ahuja K, Handyside AH. Meiotic and mitotic aneuploidies drive arrest of in vitro fertilized human preimplantation embryos. Genome Med. 2023;15(1):77. doi:10.1186/s13073-023-01231-1.
- Currie CE, Ford E, Benham Whyte L, et al. The first mitotic division of human embryos is highly error prone. Nat Commun. 2022;13(1):6755. doi:10.1038/s41467-022-34294-6.
- Akizawa H, Domingo-Muelas A, Pardo-Figuerez M, et al. Capturing aberrant cell behaviors producing defects in human embryos via live imaging. Sci Adv. 2025;11(47):eady6402. doi:10.1126/sciadv.ady6402.
- Porokh V, Kyjovská D, Martonová M, et al. Zygotic spindle orientation defines cleavage pattern and nuclear status of human embryos. Nat Commun. 2024;15(1):6369. doi:10.1038/s41467-024-50732-z.
- Vasilev F, Jiang Y, Rémillard-Labrosse G, et al. Spindle dynamics and chromosome segregation in human preimplantation embryos. Fertil Steril. 2026;125(6):1115-1124. doi:10.1016/j.fertnstert.2026.03.004.
- Abdelbaki A, McCarthy A, Karsa A, et al. Live imaging of late-stage preimplantation human embryos reveals de novo mitotic errors. Nat Biotechnol. 2026;44(9):1482-1492. doi:10.1038/s41587-025-02851-1.
- Bhide P, Chan DYL, Lanz D, et al. Clinical effectiveness and safety of time-lapse imaging systems for embryo incubation and selection in in-vitro fertilisation treatment (TILT): a multicentre, three-parallel-group, double-blind, randomised controlled trial. Lancet. 2024;404(10449):256-265. doi:10.1016/S0140-6736(24)00816-X.
- ESHRE Working group on Time-lapse technology. Good practice recommendations for the use of time-lapse technology. Hum Reprod Open. 2020;2020(2):hoaa008. doi:10.1093/hropen/hoaa008.