Nội dung chính
- 1. Mở đầu
- 2. Sự hiện diện và khả năng tiếp cận của MPs và EDCs trong vi môi trường nang noãn
- 3. Cơ chế phân tử: Stress oxy hóa và rối loạn chức năng ty thể
- 4. Rối loạn biểu hiện gene, chức năng tế bào hạt và sinh tổng hợp steroid
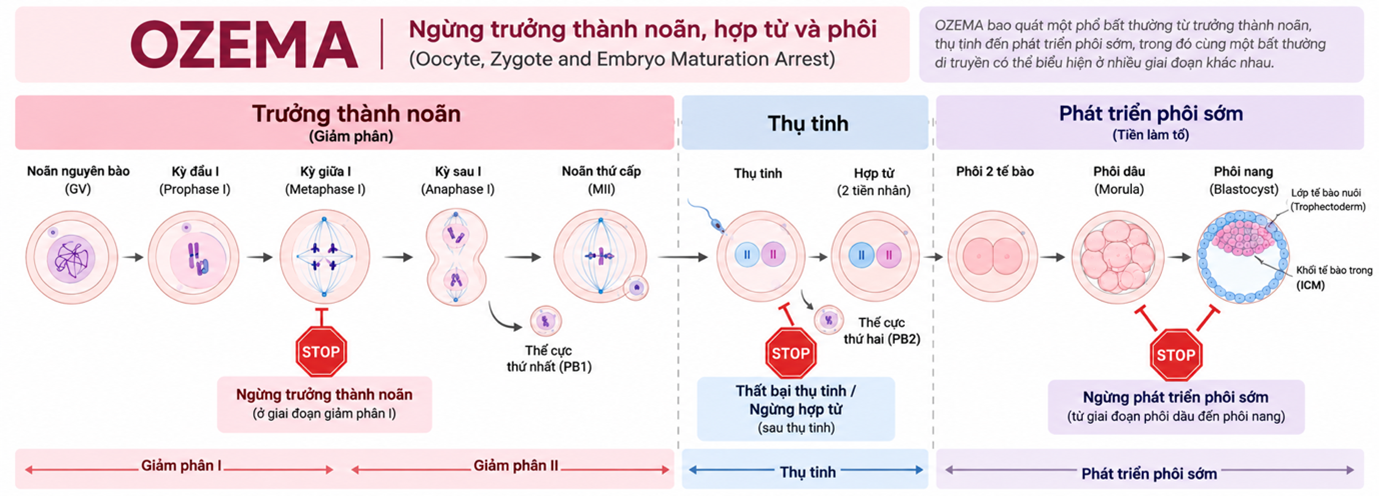
- 5. Ảnh hưởng lên chất lượng noãn, di truyền biểu sinh và phát triển phôi
- 6. Định hướng giảm thiểu tác động của MPs và EDCs trong labo IVF
- 7. Kết luận
- Tài liệu tham khảo
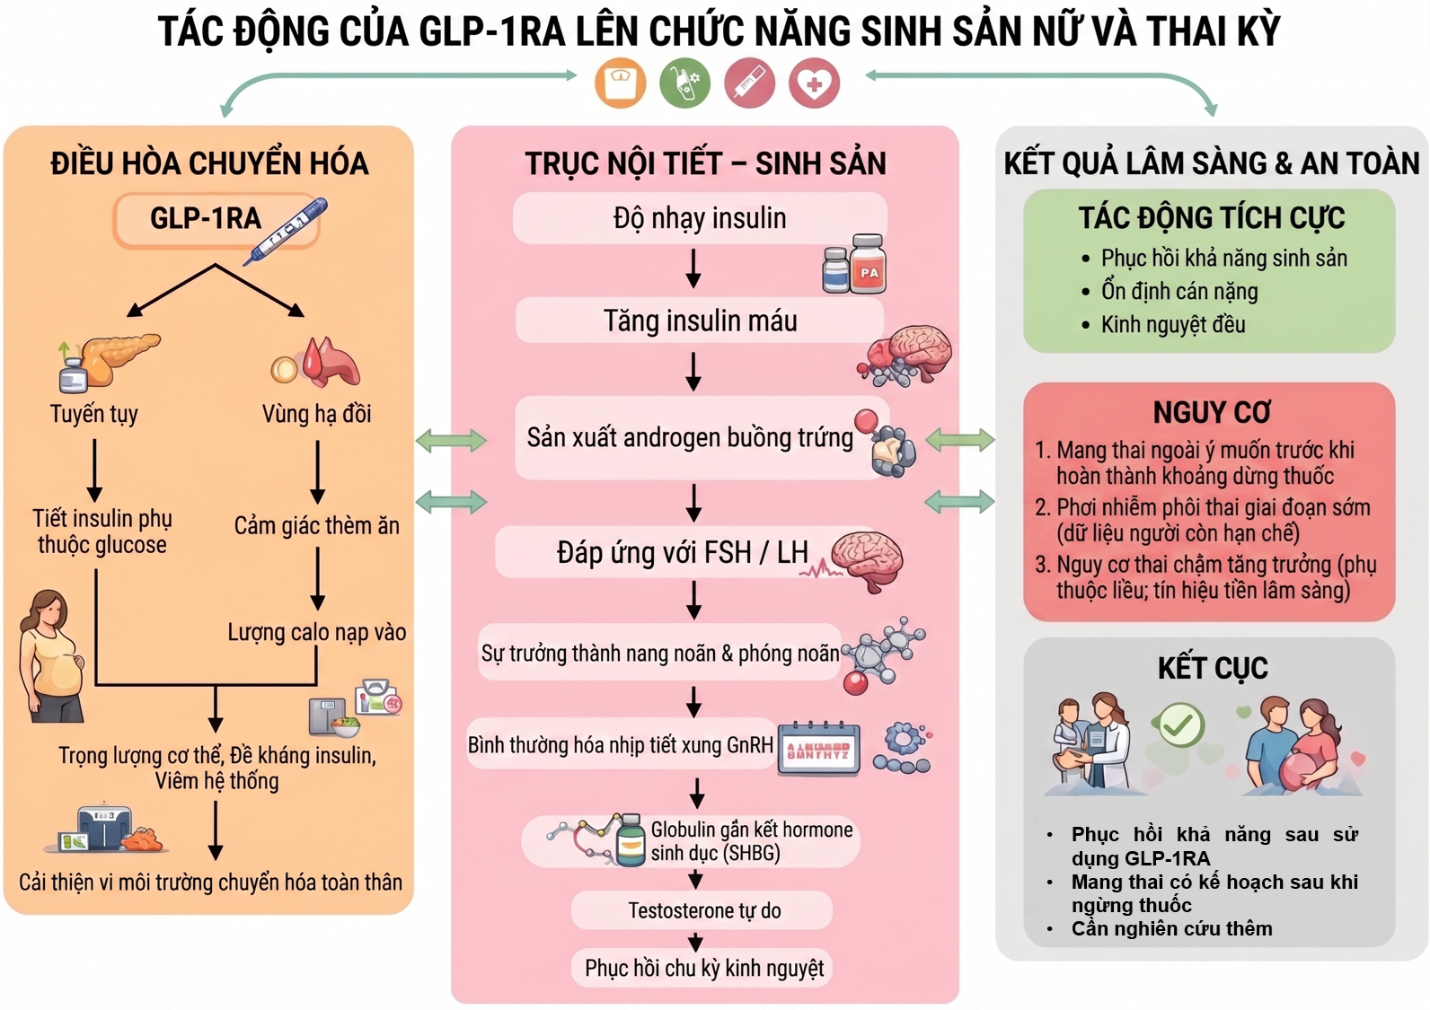
Trong nhiều thập kỷ, Hội chứng Buồng trứng Đa nang (Polycystic Ovary Syndrome - PCOS) được xem là một rối loạn nội tiết thường gặp và là nguyên nhân quan trọng gây vô sinh do rối loạn phóng noãn ở phụ nữ trong độ tuổi sinh sản. Tuy nhiên, sự hiểu biết về bản chất sinh lý bệnh của hội chứng này đang có một bước chuyển đáng chú ý. Tháng 5 năm 2026, thông qua một tiến trình đồng thuận toàn cầu được công bố trên tạp chí The Lancet, Hội chứng Buồng trứng Đa nang (PCOS) đã được đổi tên thành Hội chứng Buồng trứng - Chuyển hóa - Nội tiết (Polyendocrine Metabolic Ovarian Syndrome - PMOS)[1]. Sự thay đổi danh pháp này nhấn mạnh bản chất đa trục của bệnh lý, trong đó các đặc điểm nội tiết, chuyển hóa và chức năng buồng trứng có mối liên hệ chặt chẽ.
Ở bệnh nhân PMOS, những rối loạn nội tiết và chuyển hóa có thể đi kèm với các thay đổi trong vi môi trường nang noãn. Stress oxy hóa, rối loạn chức năng ty thể và những bất thường của tế bào hạt đã được ghi nhận có liên quan đến rối loạn phát triển nang và chất lượng noãn[2,3]. Những đặc điểm này cho thấy noãn ở bệnh nhân PMOS phát triển trong một vi môi trường có thể đã tồn tại những thay đổi về cân bằng chuyển hóa và chức năng tế bào. Đáng chú ý, các quá trình sinh học này cũng là những cơ chế có thể chịu ảnh hưởng bởi các tác nhân phơi nhiễm từ môi trường.
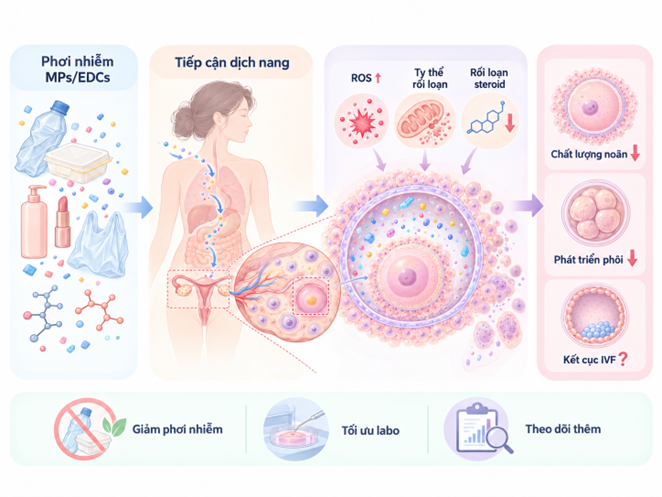
Trong bối cảnh công nghiệp hóa và sử dụng nhựa ngày càng phổ biến, vi nhựa (Microplastics – MPs), nhựa nano (Nanoplastics – NPs) và các chất gây rối loạn nội tiết (Endocrine-Disrupting Chemicals – EDCs) đang nhận được nhiều sự quan tâm trong lĩnh vực sức khỏe sinh sản[4,5]. Các nghiên cứu gần đây đã ghi nhận sự hiện diện của MPs/NPs trong dịch nang[4,6,7,8] và phát hiện nhiều nhóm EDCs trong cùng vi môi trường[5,9]. Những kết quả này cho thấy dịch nang có thể là một vị trí phơi nhiễm thực tế. Tuy nhiên, sự hiện diện của MPs hoặc EDCs trong dịch nang mới chỉ cho thấy các tác nhân này có thể tiếp cận vi môi trường nang noãn, trong khi cơ chế tiếp cận, khả năng gây ảnh hưởng trực tiếp và ý nghĩa của sự phơi nhiễm đối với chức năng buồng trứng và kết cục hỗ trợ sinh sản vẫn chưa được làm rõ.
Từ đó, câu hỏi nghiên cứu được đặt ra: “Liệu sự phơi nhiễm với MPs và EDCs có liên quan đến những thay đổi của hệ thống nang-noãn ở bệnh nhân PMOS, đặc biệt trong bối cảnh các cơ chế như stress oxy hóa, rối loạn chức năng ty thể và mất cân bằng steroid đã có thể tồn tại sẵn?”. Bài tổng quan này nhằm phân tích bằng chứng hiện có về sự hiện diện và khả năng tiếp cận của MPs/NPs và EDCs vào vi môi trường nang noãn, đồng thời xem xét sự tương đồng và mối liên hệ giữa các cơ chế tác động của các tác nhân phơi nhiễm này với những bất thường sinh học được ghi nhận trong PMOS. Trên cơ sở đó, bài viết phân tích các ảnh hưởng có thể liên quan đến tế bào hạt, noãn và sự phát triển phôi. Đồng thời, phân biệt giữa những bằng chứng đã được chứng minh, các mối liên quan quan sát được và những giả thuyết cần tiếp tục kiểm chứng.
2.1. Bằng chứng về sự xuất hiện của MPs/NPs và EDCs trong dịch nang
Các nghiên cứu trên người gần đây đã ghi nhận sự hiện diện của MPs/NPs trong dịch nang, cho thấy các hạt nhựa có thể tiếp cận vi môi trường nơi noãn phát triển[4,6,7,8]. Nghiên cứu của Montano và cộng sự (2025) là một trong những nghiên cứu đầu tiên báo cáo MPs trong dịch nang người, với 14/18 mẫu được phát hiện có MPs[4]. Trong cùng năm, Ni và cộng sự (2025) đã kết hợp phân tích MPs trong dịch nang người với mô hình noãn chuột để đánh giá ảnh hưởng của các hạt này lên quá trình trưởng thành noãn[6]. Gần đây hơn, Zhou và cộng sự cùng Si và cộng sự (2026) ghi nhận mối liên quan giữa mức MPs/NPs trong dịch nang và các chỉ số dự trữ buồng trứng giảm[7,8]. Những kết quả này cung cấp bằng chứng về sự hiện diện của MPs/NPs trong vi môi trường nang noãn, đồng thời gợi ý khả năng các tác nhân này có liên quan đến một số chỉ số chức năng buồng trứng.
Đối với EDCs, các nghiên cứu ở người cũng cho thấy dịch nang là một vị trí phơi nhiễm thực tế. Li và cộng sự (2024) đã định lượng 64 EDCs trong dịch nang và ghi nhận sự hiện diện của nhiều nhóm hóa chất, trong đó có các hợp chất Organophosphate Esters (OPEs) và Chlorinated Paraffins (CPs)[9]. Shulhai và cộng sự (2024) cũng tổng hợp các bằng chứng về sự hiện diện của nhiều nhóm EDCs trong dịch nang và những mối liên quan được ghi nhận với chức năng buồng trứng, trưởng thành noãn và kết cục hỗ trợ sinh sản[5].
Nhìn chung, các bằng chứng hiện có cho thấy MPs/NPs và nhiều nhóm EDCs có thể hiện diện trong dịch nang. Tuy nhiên, sự hiện diện của các tác nhân này mới chỉ cho thấy vi môi trường nang noãn có thể là một vị trí phơi nhiễm, trong khi mức độ ảnh hưởng sinh học của sự phơi nhiễm này vẫn cần được tiếp tục làm rõ.
2.2. Hàng rào máu-nang noãn và khả năng tiếp cận của các tác nhân phơi nhiễm
Hàng rào máu–nang noãn (Blood-Follicle Barrier - BFB) là một cấu trúc sinh lý phức tạp, góp phần kiểm soát sự trao đổi giữa hệ tuần hoàn và dịch nang. Việc phát hiện nhiều nhóm EDCs trong dịch nang cho thấy một số hóa chất có khả năng phân bố vào vi môi trường này[5,9]. Đối với MPs/NPs, sự hiện diện của các hạt trong dịch nang cũng cho thấy quá trình tiếp cận vi môi trường nang noãn có thể xảy ra[4,6,7,8]. Tuy nhiên, cơ chế cụ thể giúp các hạt này xuất hiện trong dịch nang vẫn chưa được xác định rõ.
Một nghiên cứu lâm sàng của Montano và cộng sự (2025) sử dụng kính hiển vi điện tử quét (Scanning Electron Microscopy - SEM) kết hợp đầu dò EDX (Energy Dispersive X-ray Spectroscopy) và sắc ký khí nhiệt phân-khối phổ (Pyrolysis–Gas Chromatography/Mass Spectrometry - Py-GC/MS) đã phát hiện MPs trong dịch nang của phụ nữ thực hiện IVF. MPs hiện diện ở 14/18 mẫu dịch nang, với nồng độ trung bình 2191 hạt/mL và đường kính trung bình 4,48 µm[4]. Các polymer được xác định chủ yếu gồm polyethylene (PE), polypropylene (PP) và polyvinyl chloride (PVC)[4].
Đáng chú ý, nồng độ MPs, đặc biệt PE và PVC, có mối liên quan với một số chỉ số chức năng buồng trứng. Nghiên cứu của Zhou và cộng sự (2026) ghi nhận PE và PVC có mối liên quan độc lập với nguy cơ dự trữ buồng trứng giảm (Diminished Ovarian Reserve, DOR)[7]. Nghiên cứu của Si và cộng sự (2026) cũng ghi nhận mối liên quan giữa NPs trong dịch nang và DOR[8].
Tuy nhiên, việc phát hiện MPs/NPs và EDCs trong dịch nang chỉ mới cung cấp bằng chứng về sự hiện diện của các hạt này tại vi môi trường nang noãn, trong khi cơ chế tiếp cận dịch nang và khả năng liên quan đến tính toàn vẹn của BFB vẫn chưa được làm rõ. Những vấn đề này đặc biệt đáng quan tâm ở bệnh nhân PMOS, khi vi môi trường nang noãn có thể đã tồn tại các rối loạn về chuyển hóa, stress oxy hóa và chức năng tế bào. Vì vậy, mối liên hệ giữa sự hiện diện của MPs/NPs và EDCs trong dịch nang và những thay đổi tại hàng rào này cần được tiếp tục nghiên cứu.
3.1. Stress oxy hóa và rối loạn tín hiệu tế bào
Stress oxy hóa là một trong những cơ chế thường được ghi nhận trong các nghiên cứu về ảnh hưởng của các tác nhân phơi nhiễm môi trường lên chức năng sinh sản[5,10]. Khi ROS gia tăng vượt quá khả năng kiểm soát của hệ thống chống oxy hóa, ROS có thể gây tổn thương lipid màng, protein và DNA, từ đó làm rối loạn chức năng tế bào. Ở cấp độ phân tử, nghiên cứu của Xue và cộng sự (2024) trên mô hình chuột tiếp xúc với hạt polystyrene kích thước nano (PS-NPs) cho thấy hạt nhựa ức chế con đường PI3K/AKT, kéo theo sự gia tăng tự thực (autophagy) và apoptosis ở buồng trứng[11].
Những kết quả này cho thấy stress oxy hóa và sự thay đổi trong các con đường tín hiệu nội bào có thể góp phần vào rối loạn chức năng tế bào sinh sản khi phơi nhiễm với các tác nhân môi trường. Các bằng chứng hiện tại chủ yếu đến từ mô hình thực nghiệm động vật hoặc in vitro, trong khi mức độ tương đồng của các cơ chế này ở noãn người mắc PMOS vẫn cần được làm rõ.
3.2. Rối loạn chức năng ty thể và cân bằng năng lượng
Ty thể cung cấp adenosine triphosphate (ATP) cần thiết cho các quá trình tiêu tốn năng lượng trong quá trình trưởng thành noãn, đồng thời là một nguồn phát sinh ROS. Khi chức năng ty thể bị rối loạn, sản xuất ATP có thể giảm trong khi ROS tăng, từ đó ảnh hưởng đến các quá trình cần thiết cho sự trưởng thành và chất lượng noãn.
Nghiên cứu của Chen và cộng sự (2024) cho thấy 3-methyl-4-nitrophenol (PNMC) làm suy giảm trưởng thành noãn chuột thông qua rối loạn thoi vô sắc và chức năng ty thể, kèm theo thay đổi về ROS và chuyển hóa năng lượng[12]. Bisphenol M cũng được ghi nhận gây bất thường thoi vô sắc, rối loạn vi ống và thay đổi chu kỳ tế bào ở noãn chuột[13]. Những kết quả này cho thấy các tác nhân môi trường khác nhau có thể ảnh hưởng đến nhiều quá trình quan trọng đối với sự trưởng thành noãn, bao gồm chức năng ty thể, cân bằng năng lượng và sự ổn định của thoi vô sắc[12,13].
Ở bệnh nhân PMOS, các rối loạn chuyển hóa vốn có của bệnh lý và những thay đổi được ghi nhận trong các nghiên cứu về phơi nhiễm môi trường đều có liên quan đến chức năng ty thể. Tuy nhiên, mối liên hệ này tiếp tục cần được kiểm chứng trực tiếp trên noãn người mắc PMOS.
4.1. Tế bào hạt và quá trình sinh tổng hợp steroid
Sinh tổng hợp steroid là một chức năng quan trọng của vi môi trường nang noãn. Ở trạng thái sinh lý, androgen được sản xuất từ tế bào vỏ và chuyển sang tế bào hạt. Tại đây hormone kích thích nang noãn (Follicle-Stimulating Hormone, FSH) thúc đẩy enzyme Aromatase, được mã hóa bởi gene CYP19A1, chuyển androgen thành estrogen, chủ yếu là 17β-estradiol[10]. Ở PMOS, tình trạng tăng androgen và những thay đổi về tín hiệu LH–insulin có thể làm thay đổi cân bằng steroid trong nang noãn.
Bên cạnh stress oxy hóa và rối loạn chức năng ty thể, sinh tổng hợp steroid là một cơ chế khác cần được xem xét trong tác động của các chất phơi nhiễm môi trường. Một số EDCs như BPA, PFAS và phthalates có thể ảnh hưởng đến các gene và enzyme tham gia vào quá trình sinh tổng hợp steroid, trong đó có CYP19A1 và STAR[10]. Khi những thay đổi này xảy ra trong một vi môi trường nang vốn đã có rối loạn steroid ở PMOS, chúng có thể góp phần làm thay đổi thêm cân bằng androgen-estrogen. Tuy nhiên, những thay đổi trong quá trình này có thể khác nhau tùy theo loại chất, mức phơi nhiễm và mô hình nghiên cứu.
Chức năng của tế bào cumulus cũng có vai trò quan trọng đối với sự phát triển của noãn và quá trình phóng noãn. Các gene như HAS2 và PTGS2 liên quan đến quá trình giãn nở của phức hợp tế bào cumulus-noãn, và biểu hiện gene trong tế bào cumulus có thể cung cấp thông tin về khả năng phát triển của noãn[14]. Một số EDCs có thể tác động đến các tín hiệu điều hòa chức năng tế bào hạt. Đáng chú ý, nghiên cứu trên mô hình nang noãn chuột cho thấy PFNA có thể hoạt động thông qua PPARγ và ảnh hưởng đến tăng trưởng nang, tiết hormone và phóng noãn[15]. Tuy nhiên, bằng chứng này chưa cho phép khẳng định cơ chế tương tự xảy ra ở bệnh nhân PMOS.
4.2. Điều hòa tín hiệu tế bào và con đường Hippo
Bên cạnh sinh tổng hợp steroid, sự phát triển và chức năng của nang noãn còn chịu sự điều hòa của các tín hiệu kiểm soát tăng trưởng và biệt hóa tế bào. Con đường tín hiệu Hippo/YAP là một trong những hệ thống điều hòa quan trọng trong quá trình này, đặc biệt liên quan đến sự tăng sinh và duy trì chức năng của các tế bào nang noãn. Những thay đổi trong hoạt động của con đường này có thể ảnh hưởng đến sự phát triển nang và chức năng tế bào buồng trứng. Wen và cộng sự (2025) tổng hợp các bằng chứng cho thấy rối loạn tín hiệu Hippo/YAP có liên quan đến bệnh sinh PCOS[16]. Tuy nhiên, mối liên hệ giữa Hippo/YAP và phơi nhiễm MPs hoặc EDCs trong PMOS hiện vẫn chưa được làm rõ. Vì vậy, đây có thể là một hướng cơ chế đáng được tiếp tục nghiên cứu khi xem xét tác động của các tác nhân môi trường lên vi môi trường nang noãn.
5.1. Rối loạn thoi vô sắc và phân ly nhiễm sắc thể
Noãn động vật có vú có cơ chế giảm phân đặc thù, trong đó thoi vô sắc giữ vai trò quan trọng trong việc tổ chức và phân ly nhiễm sắc thể. Khác với tế bào soma, noãn không có trung thể chứa trung tử mà phụ thuộc vào các trung tâm tổ chức vi ống không trung tử (Acentriolar Microtubule Organizing Centers - aMTOCs) và các cơ chế điều hòa như RanGTP để hình thành và tổ chức thoi vô sắc[17]. Những bất thường trong quá trình này có thể làm rối loạn cấu trúc thoi, ảnh hưởng đến sự phân ly nhiễm sắc thể và từ đó làm tăng nguy cơ sai sót nhiễm sắc thể ở noãn.
Bên cạnh những yếu tố nội tại của giảm phân, một số tác nhân môi trường cũng có thể ảnh hưởng đến thoi vô sắc và quá trình trưởng thành noãn. Trong các mô hình noãn chuột, PNMC được ghi nhận làm bất ổn định thoi vô sắc, đồng thời gây rối loạn chức năng ty thể và ảnh hưởng đến quá trình trưởng thành noãn[12]. Bisphenol M cũng được ghi nhận gây bất thường thoi vô sắc, kèm theo rối loạn tổ chức vi ống và chu kỳ tế bào[13]. Bên cạnh đó, Ni và cộng sự (2025) ghi nhận một số loại MPs có thể làm suy giảm quá trình trưởng thành noãn trong mô hình chuột[6]. Những kết quả này cho thấy các tác nhân môi trường có thể ảnh hưởng đến thoi vô sắc và quá trình trưởng thành noãn. Tuy nhiên, các bằng chứng hiện có chủ yếu đến từ mô hình động vật, chưa đủ để khẳng định phơi nhiễm MPs/EDCs làm gia tăng lệch bội ở noãn người mắc PMOS.
5.2. Di truyền biểu sinh
Di truyền biểu sinh bao gồm các cơ chế điều hòa biểu hiện gene như methyl hóa DNA, biến đổi histone và RNA không mã hóa mà không làm thay đổi trình tự DNA. Ở noãn, những cơ chế này có vai trò trong quá trình trưởng thành và phát triển phôi sớm. Nasser và cộng sự (2026) tổng hợp bằng chứng cho thấy EDCs và microRNA-21 (miRNA-21) có thể liên quan đến quá trình trưởng thành noãn và phát triển phôi tiền làm tổ thông qua các cơ chế biểu sinh[18].
Một số nghiên cứu thực nghiệm cũng ghi nhận thay đổi biểu sinh sau phơi nhiễm. Nghiên cứu của Chen và cộng sự (2025) cho thấy PNMC liên quan đến rối loạn chuyển tiếp từ chương trình gene của mẹ sang chương trình gene của hợp tử (maternal-to-zygotic transition - MZT), đồng thời đi kèm với thay đổi histone và chức năng ty thể trong phôi sớm[19]. Tuy nhiên, những thay đổi biểu sinh này phụ thuộc vào loại tác nhân và thời điểm phơi nhiễm, nên chưa thể xác định ý nghĩa chức năng hoặc ảnh hưởng của chúng đối với kết cục phôi ở người.
5.3. Ảnh hưởng đến phát triển phôi sớm
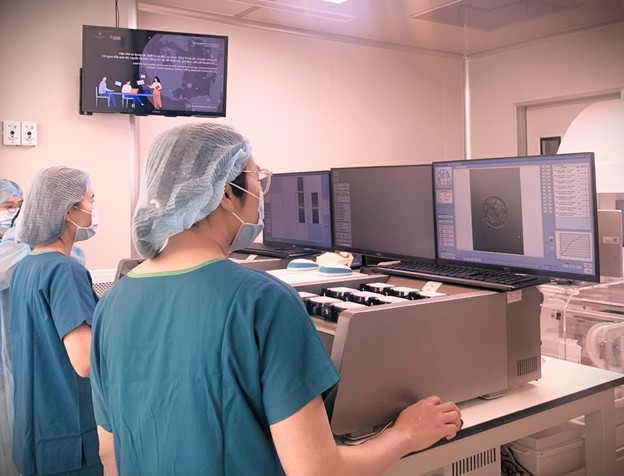
Những thay đổi ở noãn có thể biểu hiện qua quá trình phát triển của phôi sau thụ tinh và được ghi nhận bằng hệ thống theo dõi phôi liên tục (time-lapse). Một số bất thường có thể được nhận biết qua thời điểm phân chia, tốc độ phát triển và tình trạng phôi ngừng phát triển. Trong các mô hình thực nghiệm, phơi nhiễm PNMC trước thụ tinh được ghi nhận làm giảm khả năng phát triển của phôi tiền làm tổ[19]. Tuy nhiên, hiện chưa có đủ bằng chứng để xác định một kiểu hình động học phôi đặc hiệu cho phơi nhiễm MPs/EDCs ở bệnh nhân PMOS. Time-lapse có thể mô tả chi tiết diễn tiến phát triển của phôi, nhưng những đặc điểm động học này không thể tự xác định nguyên nhân liên quan đến phơi nhiễm môi trường.
Do đó, việc kết hợp dữ liệu time-lapse với thông tin về phơi nhiễm, chất lượng noãn và các kết cục IVF có thể giúp làm rõ hơn mối liên quan giữa phơi nhiễm môi trường và sự phát triển phôi ở bệnh nhân PMOS.
Noãn sau khi đã được chọc hút từ môi trường dịch nang chứa đầy yếu tố bất lợi, những tác động của stress oxy hóa và rối loạn chức năng ty thể vẫn tiếp tục ảnh hưởng đến chất lượng noãn ngay cả trong đĩa nuôi cấy. Để nâng cao tiềm năng phát triển của phôi, việc tối ưu hóa hệ thống môi trường nuôi cấy tại labo IVF là rất cần thiết.
Dữ liệu nghiên cứu hiện có cho thấy việc bổ sung melatonin trong một số mô hình nuôi cấy có thể hỗ trợ chất lượng noãn hoặc phôi, nhưng bằng chứng chưa đủ để xem đây là biện pháp thường quy trong labo IVF[20]. Trong bối cảnh phơi nhiễm MPs/EDCs, các chiến lược giảm stress oxy hóa và hạn chế nguồn phơi nhiễm trong môi trường nuôi cấy vẫn là những hướng cần tiếp tục đánh giá. Đặc biệt, labo IVF cần kiểm soát vật tư và điều kiện nuôi cấy để hạn chế các nguồn phơi nhiễm không cần thiết[20].
Về phía labo IVF, cần kiểm soát chặt chẽ sự hiện diện của EDCs phát sinh nội bộ. Cần giảm thiểu tối đa việc sử dụng các loại đĩa nuôi cấy, pipette, đầu tip chứa thành phần polycarbonate hoặc các polyme giải phóng BPA/Phthalates trong suốt quá trình thao tác giao tử và nuôi cấy phôi dài ngày. Điều này đảm bảo phôi không phải gánh chịu thêm tổn thương mới từ chính môi trường nhân tạo trong phòng thí nghiệm.
Bằng chứng hiện nay cho thấy MPs/NPs và EDCs có thể tiếp cận vi môi trường nang noãn và liên quan đến nhiều thay đổi về chức năng tế bào, chuyển hóa và chất lượng noãn. Ở bệnh nhân PMOS, những rối loạn nội tiết và chuyển hóa sẵn có có thể làm thay đổi vi môi trường nang noãn. Điều này đặt ra khả năng các tác nhân môi trường có thể liên quan đến những thay đổi thêm trong chức năng của hệ thống noãn–nang. Tuy nhiên, bằng chứng ở người hiện chưa đủ để xác định mối liên hệ này với kết cục IVF. Các nghiên cứu tiếp theo cần định lượng phơi nhiễm trong dịch nang và đối chiếu với chất lượng noãn, phôi và kết cục lâm sàng. Trong khi đó, kiểm soát nguồn phơi nhiễm và tối ưu hóa điều kiện labo IVF là những hướng tiếp cận thực tế cần được tiếp tục đánh giá.
[1] Teede HJ, Bahri Khomami M, Morman R, Laven JSE, Joham AE, Costello MF, et al. Polyendocrine metabolic ovarian syndrome, the new name for polycystic ovary syndrome: a multistep global consensus process. Lancet. 2026;407(10545):2329-2339. doi:10.1016/S0140-6736(26)00717-8.
[2] Voros C, Papadimas G, Mavrogianni D, Koulakmanidis AM, Athanasiou D, Bananis K, et al. Molecular signatures of obesity-associated infertility in polycystic ovary syndrome: the emerging role of exosomal microRNAs and non-coding RNAs. Genes (Basel). 2025;16(9):1101. doi:10.3390/genes16091101.
[3] Shen YH, Peng S, Zhu T, Shen MJ. Mechanisms of granulosa cell programmed cell death and follicular atresia in polycystic ovary syndrome. Physiol Res. 2025;74(1):31-40. doi:10.33549/physiolres.935485.
[4] Montano L, Raimondo S, Piscopo M, Ricciardi M, Guglielmino A, Chamayou S, et al. First evidence of microplastics in human ovarian follicular fluid: an emerging threat to female fertility. Ecotoxicol Environ Saf. 2025;291:117868. doi:10.1016/j.ecoenv.2025.117868.
[5] Shulhai AM, Bianco V, Donini V, Esposito S, Street ME. Which is the current knowledge on man-made endocrine-disrupting chemicals in follicular fluid? An overview of effects on ovarian function and reproductive health. Front Endocrinol (Lausanne). 2024;15:1435121. doi:10.3389/fendo.2024.1435121.
[6] Li J, Zhou L, Huang S, Duan T, Xie J, Li X, et al. The effect of endocrine-disrupting chemicals in follicular fluid: the insights from oocyte to fertilization. Environ Int. 2024;191:108957. doi:10.1016/j.envint.2024.108957.
[7] Ni D, Yu K, Yan N, Chen X, Xie Q, Yang Y, et al. Characterization of microplastics in human follicular fluid and assessment of their potential impact on mouse oocyte maturation in vitro. Ecotoxicol Environ Saf. 2025;291:117796. doi:10.1016/j.ecoenv.2025.117796.
[8] Zhou Y, Lu Y, Luo Y, Li J, Chen W, Zheng Y, et al. Associations between concentrations of microplastics in follicular fluid and the risk of diminished ovarian reserve. J Hazard Mater. 2026;502:140958. doi:10.1016/j.jhazmat.2025.140958.
[9] Si M, Xiong X, Yun C, Chen Y, Niu H, Qu Y, et al. Microplastics and nanoplastics in follicular fluid are associated with diminished ovarian reserve: clinical and molecular insights. J Adv Res. 2026. doi:10.1016/j.jare.2026.01.074.
[10] Reiter RJ, Sharma R, Chuffa LGA, Zuccari DAPC, Loh D, Banni M. Micro/nanoplastic threats to human and animal health: mitigation strategies with melatonin. Front Environ Sci. 2026;14:1834609. doi:10.3389/fenvs.2026.1834609.
[11] Zhang J, Zhang N, Mai Q, Zhou C. Mechanisms and rescue measures of female ovarian dysfunction induced by environmental endocrine chemicals: a review. Reprod Toxicol. 2025;135:108954. doi:10.1016/j.reprotox.2025.108954.
[12] Xue Y, Cheng X, Ma ZQ, et al. Polystyrene nanoplastics induce apoptosis, autophagy, and steroidogenesis disruption in granulosa cells to reduce oocyte quality and fertility by inhibiting the PI3K/AKT pathway in female mice. J Nanobiotechnology. 2024;22(1):460. doi:10.1186/s12951-024-02735-7.
[13] Chen F, Luo AF, Li MG, Zheng LX, Gu H, Zhou CF, et al. 3-Methyl-4-nitrophenol exposure deteriorates oocyte maturation by inducing spindle instability and mitochondrial dysfunction. Int J Mol Sci. 2024;25(7):3572. doi:10.3390/ijms25073572.
[14] Chen H, Liu Y, Huang Y, Xiang H, Zhang P, et al. Bisphenol M inhibits mouse oocyte maturation in vitro by disrupting cytoskeleton architecture and cell cycle processes. Reprod Toxicol. 2024;129:108667. doi:10.1016/j.reprotox.2024.108667.
[15] Uyar A, Torrealday S, Seli E. Cumulus and granulosa cell markers of oocyte and embryo quality. Fertil Steril. 2013;99(4):979-997. doi:10.1016/j.fertnstert.2013.01.129.
[16] Pattarawat P, Zhan T, Fan Y, Zhang J, Yang H, Zhang Y, et al. Exposure to long- and short-chain per- and polyfluoroalkyl substances in mice and ovarian-related outcomes: an in vivo and in vitro study. Environ Health Perspect. 2025;133(5):057024. doi:10.1289/EHP14876.
[17] Wen J, Cheng G, Zhang Y, Liu S. Hippo signaling pathway in polycystic ovary syndrome. Front Endocrinol (Lausanne). 2025;16:1623143. doi:10.3389/fendo.2025.1623143.
[18] Kitajima TS. Molecular basis of chromosome segregation and age-associated errors in oocyte meiosis I. Biol Reprod. 2026;ioag086. doi:10.1093/biolre/ioag086.
[19] Nasser M, Sabry R, Favetta LA. An overview of how epigenetics, microRNA-21, and endocrine disrupting compounds affect oocyte maturation and pre-implantation embryo development. J Dev Biol. 2026;14(2):28. doi:10.3390/jdb14020028.
[20] Chen F, Luo AF, Pan KX, Gu H, Zhou CF, Zeng W, et al. 3-Methyl-4-nitrophenol disturbs the maternal-to-zygotic transition of early embryos by damaging mitochondrial function and histone modification. Ecotoxicol Environ Saf. 2025;289:117595. doi:10.1016/j.ecoenv.2024.117595.