Nội dung chính
Những tiến bộ trong di truyền học sinh sản đã giúp xác định ngày càng nhiều nguyên nhân đơn gen liên quan đến vô sinh nữ, đặc biệt ở các trường hợp ngừng trưởng thành noãn, thất bại thụ tinh và ngừng phát triển phôi sớm [1]. Trước đây, các bất thường này thường được mô tả riêng theo từng giai đoạn, gây khó khăn trong việc xác định kiểu hình và lựa chọn bệnh nhân phù hợp để đánh giá di truyền.
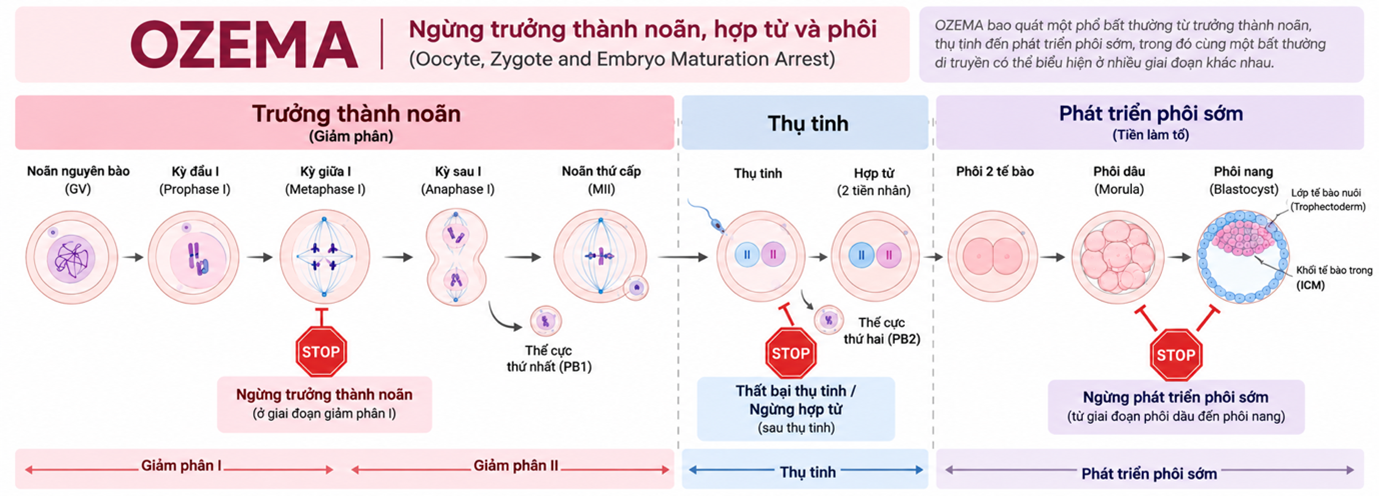
Gần đây, các nhóm khiếm khuyết trưởng thành noãn (oocyte maturation defect – OOMD) và ngừng phát triển phôi sớm (premature embryonic lethality – PREMBL) được hợp nhất dưới thuật ngữ ngừng trưởng thành noãn, hợp tử và phôi (oocyte, zygote and embryo maturation arrest – OZEMA), bao quát một phổ bất thường từ trưởng thành noãn, thụ tinh đến phát triển phôi sớm [2]. Cách phân loại này phản ánh sự chồng lấp kiểu hình của OZEMA, trong đó cùng một bất thường di truyền có thể biểu hiện ở nhiều giai đoạn phát triển khác nhau [3], [4].
Tuy nhiên, kết quả phát triển thấp trong IVF không nhất thiết phản ánh một bất thường bệnh lý, đặc biệt khi số lượng noãn hoặc phôi ít. Vì vậy, nhận diện OZEMA cần xem xét đồng thời tỷ lệ phát triển, số lượng noãn/phôi và tính lặp lại qua các chu kỳ. Do đó, bài viết này tổng hợp đặc điểm kiểu hình, cơ sở di truyền và các ngưỡng định lượng được đề xuất nhằm hỗ trợ nhận diện OZEMA và định hướng đánh giá di truyền trong hỗ trợ sinh sản (HTSS).
OZEMA không phải là một bệnh lý đơn nhất mà bao gồm một phổ kiểu hình bất thường ở nhiều giai đoạn phát triển, từ trưởng thành noãn, thụ tinh đến phát triển phôi sớm. Các biểu hiện của OZEMA có thể được phân loại theo giai đoạn phát triển bị ảnh hưởng, bao gồm ngừng trưởng thành noãn (oocyte maturation arrest -OMA), bất thường màng trong suốt (zona pellucida abnormality-ZPA), thất bại thụ tinh (fertilization failure-FF), ngừng hợp tử (zygote arrest-ZA), ngừng phát triển phôi sớm (early embryo arrest -EEA), kiểu hình hỗn hợp và một số bất thường khác [2].
Trưởng thành noãn là một quá trình sinh học phức tạp, bao gồm sự phối hợp chặt chẽ giữa trưởng thành nhân và trưởng thành bào tương, dưới sự điều hòa của các cơ chế phân tử, nội tiết và tương tác giữa noãn với tế bào cumulus. Khi noãn không thể hoàn tất quá trình này và bị ngừng tại một giai đoạn của quá trình giảm phân, tình trạng này được gọi là ngừng trưởng thành noãn (oocyte maturation arrest – OMA) [5]. Trong các chu kỳ HTSS, OMA biểu hiện bằng tỷ lệ noãn trưởng thành MII thấp bất thường trên tổng số phức hợp noãn–cumulus (cumulus–oocyte complex – COC) mặc dù đã được kích thích buồng trứng và khởi phát trưởng thành noãn. OMA có ý nghĩa lâm sàng quan trọng vì làm giảm số lượng noãn trưởng thành có khả năng thụ tinh, từ đó hạn chế cơ hội tạo phôi và có thể dẫn đến thất bại điều trị lặp lại.
Các nghiên cứu di truyền đã xác định nhiều gen liên quan đến OMA, trong đó các biến thể có thể ảnh hưởng đến điều hòa chu kỳ tế bào, hình thành thoi phân bào, kiểm soát giảm phân và điều hòa RNA của mẹ [1], [5].
2.2. Bất thường màng trong suốt
Bất thường màng trong suốt (zona pellucida abnormality – ZPA) liên quan chủ yếu đến bốn gen cấu trúc ZP1, ZP2, ZP3 và ZP4. Các bất thường của nhóm gen ZP có thể ảnh hưởng đến sự hình thành màng trong suốt, hình thái noãn, khả năng thu nhận noãn và tương tác giữa tinh trùng với noãn. Một số biến thể, đặc biệt ở ZP1–ZP3, đã được ghi nhận ở bệnh nhân có kiểu hình giống hội chứng nang trống (empty follicle syndrome – EFS) hoặc thoái hóa noãn [6], [7].
Thất bại thụ tinh (fertilization failure – FF) được đặc trưng bởi tỷ lệ hình thành hợp tử 2PN thấp bất thường trên số noãn MII được sử dụng cho IVF/ICSI. Đối với FF có nguồn gốc từ noãn, nhiều bất thường di truyền liên quan đến hoạt hóa noãn, điều hòa chu kỳ tế bào và hoàn tất giảm phân đã được ghi nhận. Trong đó, WEE2 có mối liên hệ rõ với thất bại thụ tinh, trong khi PATL2 và TUBB8 có phổ biểu hiện rộng hơn [1], [8], [9]. Điểm quan trọng là FF không nhất thiết có nguồn gốc từ noãn. Các bất thường di truyền của tinh trùng cũng có thể gây thất bại hoạt hóa noãn và phát triển phôi sớm. Vì vậy, trước một trường hợp FF lặp lại, việc xác định nguyên nhân từ phía noãn hay tinh trùng có ý nghĩa quyết định đối với chiến lược điều trị.
Ngừng hợp tử (zygote arrest – ZA) xảy ra khi thụ tinh và hình thành 2PN bình thường nhưng hợp tử không thể thực hiện lần phân chia đầu tiên hoặc tỷ lệ phân chia thấp bất thường. ZA là một kiểu hình tương đối hiếm trong phổ OZEMA. Các biến thể được ghi nhận liên quan đến BTG4, CHEK1 và RGS12 [2]. Đáng chú ý, BTG4 có mối liên hệ chặt với việc hợp tử ngừng phát triển ở lần phân chia đầu tiên, cho thấy một số gen có thể tạo ra kiểu hình tương đối đặc hiệu về thời điểm phát triển [10].
2.5. Ngừng phát triển phôi sớm
Ngừng phát triển phôi sớm (early embryo arrest – EEA) biểu hiện bằng việc hợp tử 2PN được hình thành nhưng phôi không thể tiếp tục phát triển đến phôi nang với tỷ lệ mong đợi. Đây là kiểu hình có tính đa dạng di truyền cao. Một số gen liên quan gồm FBXO43, KHDC3L, KPNA7, LHX8, MOS, NLRP2, NLRP5, NLRP7, NLRP14, OOEP, PADI6, SYPR4, TLE6 và TUBB8 [11]. Một số gen trong nhóm này mã hóa các thành phần hoặc có chức năng liên quan đến phức hợp dưới vỏ noãn có nguồn gốc từ mẹ (subcortical maternal complex – SCMC), một phức hợp protein được hình thành trong noãn và đóng vai trò quan trọng trong quá trình chuyển tiếp noãn-phôi, phân chia phôi sớm và duy trì sự phát triển trước làm tổ [12].
Một trong những phát hiện quan trọng nhất là các kiểu hình OZEMA không hoàn toàn tách biệt. Một bệnh nhân có thể biểu hiện các bất thường ở nhiều giai đoạn khác nhau, từ trưởng thành noãn, thụ tinh đến phát triển hợp tử và phôi sớm. Đặc biệt, một số gen như PATL2 và TUBB8 có phổ biểu hiện rộng, cho thấy cùng một bất thường di truyền có thể liên quan đến nhiều kiểu hình khác nhau [1], [9]. Sự chồng lấp này cho thấy kiểu hình quan sát được tại một thời điểm hoặc trong một chu kỳ điều trị có thể chưa phản ánh đầy đủ bản chất của khiếm khuyết phân tử. Vì vậy, việc đánh giá cần xem xét toàn bộ quá trình phát triển từ noãn đến phôi và tính lặp lại của bất thường qua các chu kỳ.
3.1. Vai trò của các gen hiệu ứng mẹ
Trong giai đoạn phát triển sớm, trước khi bộ gen phôi được hoạt hóa đầy đủ, sự phát triển của phôi phụ thuộc chủ yếu vào RNA và protein có nguồn gốc từ mẹ được tích lũy trong noãn. Nhiều gen liên quan đến OZEMA thuộc nhóm gen hiệu ứng mẹ (maternal-effect genes), mã hóa các RNA hoặc protein đóng vai trò thiết yếu trong quá trình trưởng thành noãn cũng như những giai đoạn phát triển đầu tiên sau thụ tinh. Do đó, các biến thể gây mất hoặc suy giảm chức năng của những gen này có thể biểu hiện ở nhiều giai đoạn khác nhau, từ ngừng trưởng thành noãn, thất bại thụ tinh đến ngừng phát triển hợp tử hoặc phôi sớm [1].
Cơ sở di truyền của OZEMA ngày càng được mở rộng, với nhiều gen liên quan đến các cơ chế khác nhau như điều hòa giảm phân và chu kỳ tế bào, tổ chức thoi phân bào, điều hòa RNA của mẹ, cấu trúc màng trong suốt và hoạt động của phức hợp dưới vỏ noãn có nguồn gốc từ mẹ (SCMC) [1], [12], [4]. Sự đa dạng về cơ chế phân tử góp phần tạo nên phổ biểu hiện rộng của OZEMA.
3.2. Mối liên hệ kiểu gen-kiểu hình
Các gen liên quan đến OZEMA có thể biểu hiện với mức độ đặc hiệu kiểu hình khác nhau. Một số gen có xu hướng liên quan đến một giai đoạn phát triển tương đối đặc trưng, trong khi một số khác có phổ biểu hiện rộng và có thể ảnh hưởng đến nhiều giai đoạn từ trưởng thành noãn đến phát triển phôi sớm [1], [3]. Điều này cho thấy một gen có thể liên quan đến nhiều kiểu hình, trong khi cùng một kiểu hình có thể liên quan đến nhiều gen. Vì vậy, đánh giá cần xem xét toàn bộ quá trình phát triển từ noãn đến phôi và tính lặp lại của bất thường qua các chu kỳ để hỗ trợ lựa chọn và diễn giải xét nghiệm di truyền.
Một trong những thách thức trong nhận diện OZEMA là phân biệt kết quả phát triển thấp do biến thiên ngẫu nhiên với một bất thường phát triển thực sự. Việc sử dụng một tỷ lệ cố định đơn thuần có thể chưa phù hợp, đặc biệt ở các chu kỳ có số lượng noãn hoặc phôi ít, khi chỉ một vài biến cố cũng có thể làm thay đổi đáng kể tỷ lệ quan sát được [2].
Van Der Kelen và cộng sự (2026) sử dụng các giá trị tham chiếu dựa trên các chỉ số hiệu suất được công bố trong Vienna Consensus, gồm tỷ lệ trưởng thành noãn MII/COC 75%, tỷ lệ thụ tinh 2PN/MII 60%, tỷ lệ phân chia phôi/2PN 95% và tỷ lệ phát triển đến phôi nang/2PN 40%. Trong nghiên cứu OZEMA, các giá trị này được sử dụng làm xác suất phát triển kỳ vọng tại từng giai đoạn để xây dựng các ngưỡng nhận diện [2], [13].
Trên cơ sở đó, nhóm tác giả áp dụng mô hình phân phối nhị thức (binomial model). Mô hình này ước tính xác suất thu được một số lượng kết quả thành công nhất định dựa trên tổng số quan sát (n) và xác suất thành công kỳ vọng (p). Chẳng hạn, khi đánh giá trưởng thành noãn, n là số COC thu nhận được, p = 0,75 và kết quả quan sát là số noãn đạt MII. Với từng giá trị n, mô hình xác định số noãn MII thấp đến mức nào thì xác suất quan sát được kết quả đó hoặc thấp hơn nhỏ hơn 5%, giả định xác suất trưởng thành thực sự bằng giá trị tham chiếu. Kết quả này được xem là thấp có ý nghĩa thống kê và được sử dụng để đề xuất ngưỡng nhận diện OMA. Nguyên tắc tương tự được áp dụng cho thụ tinh, phân chia phôi và phát triển đến phôi nang [2].
Đối với ngừng trưởng thành noãn (OMA), tỷ lệ noãn MII trên số COC thu nhận được (MII/COC) được sử dụng làm chỉ số đánh giá. Với 6 COC, ≤2 noãn MII được xem là thấp có ý nghĩa thống kê so với tỷ lệ trưởng thành tham chiếu 75%, với 10 COC, ngưỡng tương ứng là ≤4 noãn MII. Theo mô hình nhị thức, cần tối thiểu 3 COC để một tỷ lệ trưởng thành thấp có thể đạt ý nghĩa thống kê. Khi chỉ thu nhận 1–2 COC, số lượng quan sát chưa đủ để phân biệt đáng tin cậy bất thường thực sự với biến thiên ngẫu nhiên [2].
4.2. Ngưỡng nhận diện thất bại thụ tinh
Đối với thất bại thụ tinh (FF), tỷ lệ hình thành hợp tử 2PN trên số noãn MII được sử dụng làm chỉ số đánh giá. Với 6 noãn MII, sự hình thành ≤1 hợp tử 2PN được xem là thấp có ý nghĩa thống kê so với tỷ lệ thụ tinh tham chiếu 60%, với 10 noãn MII, ngưỡng tương ứng là ≤2 hợp tử 2PN. Theo mô hình nhị thức, cần tối thiểu 4 noãn MII để một tỷ lệ thụ tinh thấp có thể đạt ý nghĩa thống kê [2].
4.3. Ngưỡng nhận diện ngừng hợp tử
Đối với ngừng hợp tử (ZA), khả năng tiếp tục phân chia của hợp tử 2PN được đánh giá bằng tỷ lệ phôi phân chia/2PN, với giá trị tham chiếu 95%. Khi có 10 hợp tử 2PN, ≤7 phôi tiếp tục phân chia được xem là thấp có ý nghĩa thống kê. Do tỷ lệ phân chia kỳ vọng cao, chỉ cần tối thiểu 2 hợp tử 2PN để trường hợp không có hợp tử nào tiếp tục phân chia có thể đạt ý nghĩa thống kê theo mô hình [2].
4.4. Ngưỡng nhận diện ngừng phát triển phôi sớm
Đối với ngừng phát triển phôi sớm (EEA), tỷ lệ phôi nang trên số hợp tử 2PN được đánh giá với giá trị tham chiếu 40%. Do tỷ lệ phát triển đến phôi nang kỳ vọng thấp hơn các chỉ số ở giai đoạn trước, cần số lượng quan sát lớn hơn để phân biệt bất thường thực sự với biến thiên ngẫu nhiên. Với 6–9 hợp tử 2PN, việc không hình thành phôi nang được xem là kết quả thấp có ý nghĩa thống kê, với 10 hợp tử 2PN, ngưỡng tương ứng là ≤1 phôi nang. Theo phân tích, cần tối thiểu 6 hợp tử 2PN để đánh giá kiểu hình EEA bằng phương pháp này [2].
Như vậy, số lượng quan sát tối thiểu để một kết quả phát triển thấp có thể đạt ý nghĩa thống kê khác nhau theo từng giai đoạn, gồm ≥3 COC đối với OMA, ≥4 noãn MII đối với FF, ≥2 hợp tử 2PN đối với ZA và ≥6 hợp tử 2PN đối với EEA. Điều này cho thấy không thể áp dụng một ngưỡng tỷ lệ cố định cho toàn bộ phổ OZEMA. Bên cạnh đó, tính lặp lại của kiểu hình cũng cần được xem xét. Van Der Kelen và cộng sự đề xuất kiểu hình nên được ghi nhận trong ít nhất hai chu kỳ HTSS độc lập trước khi xem xét đánh giá di truyền liên quan đến OZEMA [2]. Các ngưỡng này mang tính đề xuất nhằm hỗ trợ nhận diện kiểu hình và định hướng đánh giá di truyền, chưa nên được xem là tiêu chuẩn chẩn đoán OZEMA đã được xác nhận.
Việc nhận diện OZEMA cần dựa trên tỷ lệ phát triển, số lượng noãn/phôi và tính lặp lại của kiểu hình qua các chu kỳ, qua đó giúp phân biệt bất thường thực sự với biến thiên ngẫu nhiên. Ghi nhận có hệ thống các chỉ số COC, noãn MII, hợp tử 2PN, phôi phân chia và phôi nang có thể hỗ trợ xác định kiểu hình và nhận diện bệnh nhân phù hợp cho xét nghiệm di truyền. Các ngưỡng hiện nay vẫn mang tính đề xuất và cần được xác nhận thêm trong các nghiên cứu tiến cứu, đa trung tâm trước khi áp dụng rộng rãi. Trong tương lai, việc kết hợp đặc điểm kiểu hình trong labo với xét nghiệm di truyền có thể giúp xác định nguyên nhân, cải thiện tiên lượng và cung cấp cơ sở cho cá thể hóa chiến lược điều trị ở bệnh nhân OZEMA.
[1] O. A. Solovova and V. B. Chernykh, ‘Genetics of Oocyte Maturation Defects and Early Embryo Development Arrest’, Genes (Basel), vol. 13, no. 11, p. 1920, Oct. 2022, doi: 10.3390/genes13111920.
[2] Van Der Kelen A. et al., ‘A comprehensive review for defining cut-off values of oocyte, zygote, and embryo maturation arrest (OZEMA) due to maternal-effect genes: towards the establishment of clinical criteria’, Hum Reprod, vol. 41, no. 7, pp. 1207–1219, Jul. 2026, doi: 10.1093/humrep/deag072.
[3] C.-F. Fei and L.-Q. Zhou, ‘Gene mutations impede oocyte maturation, fertilization, and early embryonic development’, Bioessays, vol. 44, no. 10, p. e2200007, Oct. 2022, doi: 10.1002/bies.202200007.
[4] F. Innocenti et al., ‘Maternal effect factors that contribute to oocytes developmental competence: an update’, J Assist Reprod Genet, vol. 39, no. 4, pp. 861–871, Apr. 2022, doi: 10.1007/s10815-022-02434-y.
[5] W. Wang, Q. Sang, and L. Wang, ‘Genetic factors of oocyte maturation arrest: an important cause for recurrent IVF/ICSI failures’, J Assist Reprod Genet, vol. 41, no. 8, pp. 1951–1953, Aug. 2024, doi: 10.1007/s10815-024-03195-6.
[6] E. S. Litscher and P. M. Wassarman, ‘Zona pellucida genes and proteins and human fertility’, Trends Dev Biol, vol. 13, pp. 21–33, 2020.
[7] G. Luo et al., ‘Novel mutations in ZP1 and ZP2 cause primary infertility due to empty follicle syndrome and abnormal zona pellucida’, J Assist Reprod Genet, vol. 37, no. 11, pp. 2853–2860, Nov. 2020, doi: 10.1007/s10815-020-01926-z.
[8] Q. Sang et al., ‘Homozygous Mutations in WEE2 Cause Fertilization Failure and Female Infertility’, The American Journal of Human Genetics, vol. 102, no. 4, pp. 649–657, Apr. 2018, doi: 10.1016/j.ajhg.2018.02.015.
[9] R. Feng et al., ‘Mutations in TUBB8 cause a multiplicity of phenotypes in human oocytes and early embryos’, J Med Genet, vol. 53, no. 10, pp. 662–671, Oct. 2016, doi: 10.1136/jmedgenet-2016-103891.
[10] W. Zheng et al., ‘Homozygous Mutations in BTG4 Cause Zygotic Cleavage Failure and Female Infertility’, Am J Hum Genet, vol. 107, no. 1, pp. 24–33, Jul. 2020, doi: 10.1016/j.ajhg.2020.05.010.
[11] Y. Wei et al., ‘Genetic mechanisms of fertilization failure and early embryonic arrest: a comprehensive review’, Hum Reprod Update, vol. 30, no. 1, pp. 48–80, Feb. 2024, doi: 10.1093/humupd/dmad026.
[12] D. Bebbere, D. F. Albertini, G. Coticchio, A. Borini, and S. Ledda, ‘The subcortical maternal complex: emerging roles and novel perspectives’, Mol Hum Reprod, vol. 27, no. 7, p. gaab043, Jul. 2021, doi: 10.1093/molehr/gaab043.
[13] ESHRE Special Interest Group of Embryology and Alpha Scientists in Reproductive Medicine. Electronic address: coticchio.biogenesi@grupposandonato.it, ‘The Vienna consensus: report of an expert meeting on the development of ART laboratory performance indicators’, Reprod Biomed Online, vol. 35, no. 5, pp. 494–510, Nov. 2017, doi: 10.1016/j.rbmo.2017.06.015.