Nội dung chính
Mục tiêu hàng đầu của các kỹ thuật hỗ trợ sinh sản (HTSS) là sinh ra một trẻ khỏe mạnh. Trong bối cảnh chuyển đơn phôi ngày càng được áp dụng rộng rãi, lựa chọn phôi có tiềm năng làm tổ và phát triển thành trẻ sinh sống là một yêu cầu quan trọng trong phòng thí nghiệm HTSS.
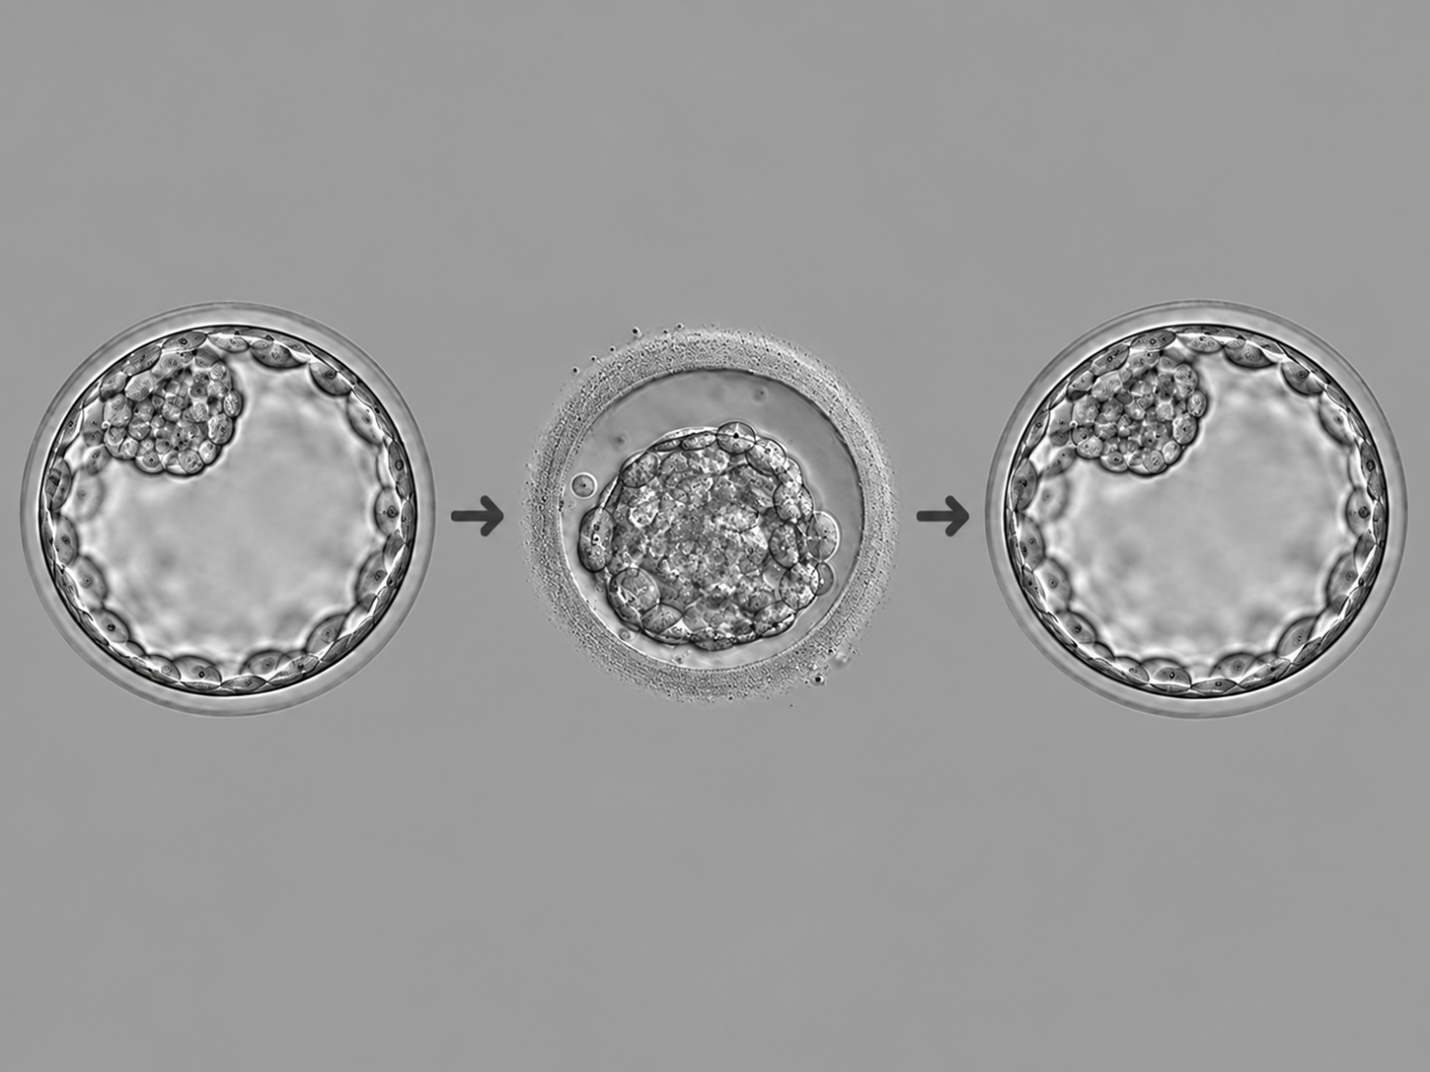
Giai đoạn chuyển tiếp từ hợp tử (zygote) sang phôi hai tế bào là thời điểm sinh học đặc biệt nhạy cảm và dễ phát sinh sai sót trong quá trình phát triển sớm của phôi.1 Những rối loạn xảy ra trong lần phân bào đầu tiên có thể ảnh hưởng đến quá trình phát triển tiếp theo. Trên thực tế, chỉ khoảng 50% số noãn thụ tinh in vitro có thể phát triển thành phôi nang.2
Hiện tượng đa nhân (multinucleation) là một bất thường thường gặp ở phôi giai đoạn sớm. Công nghệ theo dõi phôi liên tục (time-lapse imaging – TLI) đã ghi nhận tình trạng đa nhân ở khoảng 37 - 42% phôi hai tế bào, và tỷ lệ này có thể cao hơn trong các nghiên cứu quan sát tế bào sống chuyên sâu.3 Trước đây, phôi đa nhân thường được xem là dấu hiệu tiên lượng kém và có ảnh hưởng bất lợi đến kết cục lâm sàng. Tuy nhiên, các bằng chứng gần đây từ TLI và xét nghiệm di truyền tiền làm tổ cho thấy không phải mọi bất thường nhân đều có ý nghĩa tiên lượng như nhau, đặc biệt cần phân biệt hiện tượng hai nhân (Binucleation – 2BI) với đa nhân thực sự (True multinucleation – 2MULTI).4,5
Bài tổng quan này nhằm cập nhật cơ chế hình thành bất thường nhân, đặc điểm phân biệt 2BI và 2MULTI, và ý nghĩa của các bất thường này đối với sự phát triển và lựa chọn phôi trong IVF.
-
- Hình thái và tính ổn định của thoi phân bào
Nghiên cứu của Ono và cộng sự (2024) cho thấy hình thái và tính ổn định của thoi phân bào trong lần phân chia đầu tiên của phôi có sự biến thiên đáng kể. Những thoi phân bào có tỷ lệ chiều dài/ chiều rộng thấp (low aspect ratio), biểu hiện dạng dẹt hoặc bè, có xu hướng liên quan đến sự hình thành đa nhân ở phôi giai đoạn hai tế bào.
Ngoài ra, hiện tượng mất hội tụ ở các cực thoi phân bào (Spindle pole defocusing) được quan sát ở nhiều thoi phân bào, đặc biệt trong kỳ giữa (metaphase). Hiện tượng này có thể phản ánh sự bất ổn định của trung thể và hệ thống vi ống, đồng thời có mối liên quan với sự xuất hiện của các bất thường về nhân ở phôi.3
Bên cạnh đó, sự hình thành thoi phân bào kép (dual spindles), trong đó hai thoi phân bào tồn tại tạm thời hoặc kéo dài, có thể duy trì sự phân tách tương đối của bộ gen có nguồn gốc từ bố và mẹ. Sự tồn tại kéo dài của hai thoi phân bào riêng biệt có thể cản trở quá trình hợp nhất và phân chia đồng bộ của vật chất di truyền, từ đó góp phần dẫn đến hình thành phôi 2 nhân sau lần phân bào đầu tiên.1,4
-
- Stress sao chép (replication stress) và tổn thương DNA
Sau thụ tinh, DNA có nguồn gốc từ bố và mẹ cần được sao chép trước khi các nhiễm sắc thể có thể gắn vào thoi phân bào và phân ly về hai cực tế bào. Theo Palmerola và cộng sự (2022), quá trình sao chép DNA diễn ra trong pha S, khoảng 6-13 giờ sau khi tiêm tinh trùng vào bào tương noãn, sau đó chuyển sang pha G2, kéo dài khoảng 8-14 giờ trước khi phôi bước vào lần phân chia đầu tiên.6
Sao chép DNA là một quá trình phức tạp và dễ phát sinh sai sót. Một nghiên cứu cho thấy tổn thương DNA không hiện diện ngay từ đầu mà có thể phát sinh trong quá trình sao chép. Cơ chế này có thể liên quan đến sự đình trệ của các chạc sao chép DNA (replication forks), khiến một số vùng DNA không được sao chép hoàn toàn. Nguy cơ này đặc biệt đáng lưu ý tại những vùng có mật độ điểm khởi đầu sao chép thấp (replication origins). Nếu DNA chưa được sao chép hoàn toàn hoặc vẫn còn tổn thương trước khi phôi bước vào lần phân chia đầu tiên, các bất thường này có thể cản trở quá trình phân ly chính xác của nhiễm sắc thể, từ đó làm gia tăng nguy cơ phát sinh các lỗi trong quá trình hình thành nhân.1
-
- Vai trò của các gen hiệu ứng mẹ (Maternal-effect genes – MEGs)
Trong quá trình phát triển nang noãn, sự tích lũy mRNA và protein có nguồn gốc từ mẹ trong noãn đóng vai trò thiết yếu trong việc điều hòa quá trình trưởng thành của noãn, thụ tinh và các lần phân chia phôi sớm, trước khi hệ gen phôi được hoạt hóa (embryonic genome activation – EGA).1 Các gen mã hóa những sản phẩm này được gọi là gen hiệu ứng mẹ (MEGs). Các đột biến hoặc biến thể di truyền ở một số MEGs quan trọng, như TUBB8, TLE6, PLK4, BTG4, có thể làm rối loạn nghiêm trọng tổ chức vi ống, chức năng trung thể và điều hòa chu kỳ tế bào, từ đó ảnh hưởng đến quá trình phân bào và làm gián đoạn sự phát triển của phôi ở giai đoạn sớm.1
-
- Các cơ chế tế bào dẫn đến bất thường phân chia
Bên cạnh các bất thường về thoi phân bào, sao chép DNA và MEGs, hiện tượng đa nhân ở phôi giai đoạn sớm còn có thể phát sinh do hòa nhập phôi bào (blastomere fusion/ reverse cleavage) và thất bại trong phân chia tế bào chất (cytokinesis failure).7 Trong trường hợp hòa nhập phôi bào, hai hoặc nhiều phôi bào sau khi phân chia có thể hợp nhất trở lại thành một tế bào, khiến các nhân riêng biệt cùng tồn tại trong một tế bào và tạo nên hình thái đa nhân. Trong khi đó, khi phân chia tế bào chất không hoàn tất, các nhiễm sắc thể đã được phân ly nhưng không được phân chia vào các tế bào con riêng biệt, dẫn đến sự tồn tại của hai hoặc nhiều nhân trong cùng một tế bào. Như vậy, hiện tượng đa nhân không chỉ bắt nguồn từ lỗi phân ly nhiễm sắc thể mà còn từ những sai lệch trong quá trình phân chia và tách tế bào sau nguyên phân.7
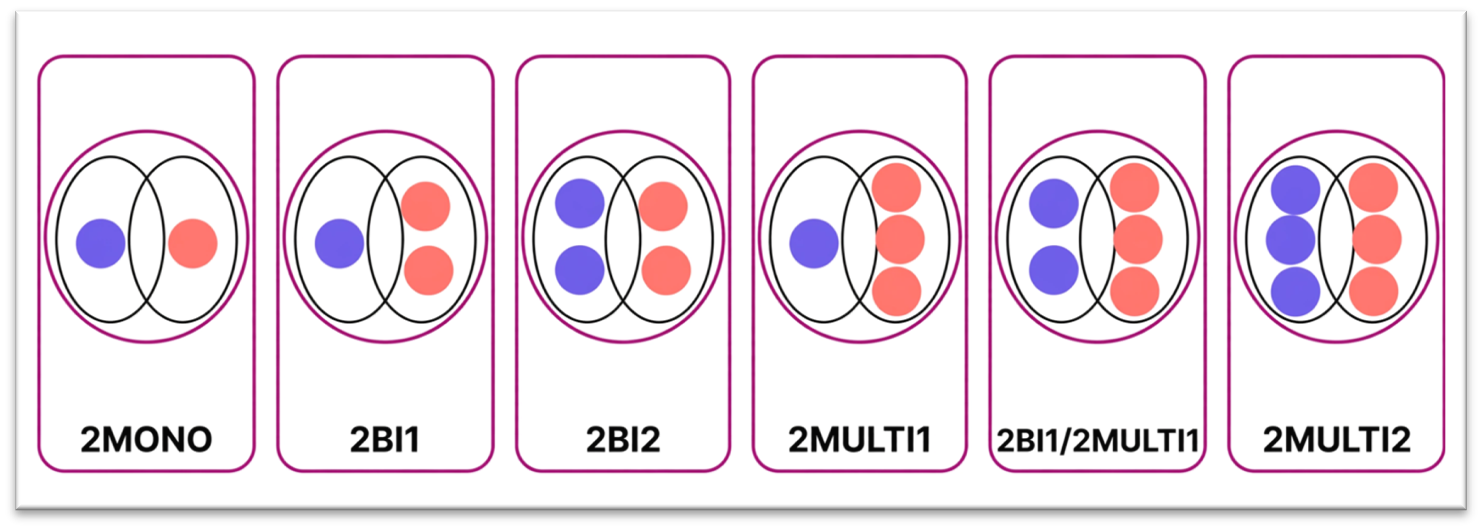
Dựa trên hướng dẫn chuẩn hóa danh pháp của Ciray và cộng sự (2014)8 và các phân tích TLI, các kiểu hình của nhân ở phôi ngày 2 được phân thành:7
-
- Đơn nhân (Mononucleation – 2MONO)
Phôi bào có một nhân duy nhất, đường kính trung bình khoảng 18-20 µm, với màng nhân rõ ràng, bên trong chứa các hạch nhân (nucleolar precursor bodies – NPBs).3,4,7
-
- Hai nhân (Binucleation – 2BI)
Phôi bào chứa hai nhân có kích thước tương đồng, được phân loại thành hai dạng: (1) 2BI1 – một trong hai phôi bào chứa 2 nhân, (2) 2BI2 – cả hai phôi bào đều chứa hai nhân.5,7 Hiện tượng này có thể bắt nguồn từ sự tồn tại độc lập của hai thoi phân bào hoặc do sự tái hình thành sớm của màng nhân trước khi quá trình phân chia tế bào chất hoàn tất.5 Cơ chế này có thể góp phần duy trì trạng thái lưỡng bội ở các tế bào con.4
-
- Đa nhân thực sự (True multinucleation – 2MULTI)
Phôi bào chứa nhiều hơn hai nhân có kích thước tương đương. 2MULTI được chia thành hai dạng: (1) một phôi bào chứa nhiều nhân, (2) cả hai phôi bào chứa nhiều nhân. Hiện tượng này có thể phát sinh từ sự bất ổn định của thoi phân bào, mất hội tụ cực thoi (spindle pole defocusing), hình thành thoi phân bào ba cực hoặc tổn thương DNA và nhiễm sắc thể.5,7
-
- Các bất thường nhân khác (Minor nucleation errors)
- Vi nhân (Micronucleation)
- Các bất thường nhân khác (Minor nucleation errors)
Phôi bào chứa một nhân chính lớn kèm theo một hoặc nhiều vi nhân, có đường kính <10 µm.7 Vi nhân có thể hình thành khi một số nhiễm sắc thể không được đóng gói vào nhân chính sau quá trình phân ly nhiễm sắc thể, dẫn đến sự hình thành các cấu trúc nhân nhỏ tách biệt.1,4
-
-
- Nhân rạn nứt (Fractured nucleation)
-
Phôi bào có một đến hai nhân lớn được bao quanh bởi nhiều cấu trúc nhân nhỏ, tạo nên hình ảnh nhân rạn nứt.7
-
-
- Không nhân (Anucleation)
-
Phôi bào không quan sát thấy nhân trong kỳ trung gian (interphase).7
-
- Tác động đến tiềm năng phát triển phôi
-
Các nghiên cứu sử dụng TLI cho thấy 2BI và 2MULTI có khả năng phát triển khác nhau.7 Trong đó, phôi 2BI, đặc biệt 2BI1, vẫn có khả năng phát triển tốt, với tỷ lệ hình thành phôi nang chất lượng tốt (≥3BB) đạt 87%, cao hơn so với 70% ở phôi 2MONO. Ngược lại, tỷ lệ này chỉ khoảng 47% ở phôi 2MULTI2, với thời gian phát triển đến phôi nang kéo dài.7
Sự xuất hiện bất thường nhân cũng liên quan đến một số đặc điểm động học và sinh học của phôi. Thời gian phân chia đầu tiên kéo dài làm tăng nguy cơ lỗi nhân. Bên cạnh đó, tiêm tinh trùng vào bào tương noãn (Intracytoplasmic sperm injection – ICSI), sử dụng tinh trùng phẫu thuật và sự không đồng đều về kích thước phôi bào cũng được ghi nhận là các yếu tố liên quan.7
Về mặt di truyền, các nghiên cứu sàng lọc di truyền tiền làm tổ để phát hiện lệch bội nhiễm sắc thể (Preimplantation genetic testing for aneuploidy – PGT-A) cho thấy bất thường nhân ở giai đoạn phôi hai tế bào không nhất thiết đồng nghĩa với sự lệch bội ở phôi nang. Một số phôi có khả năng phục hồi về trạng thái đơn nhân trong các lần phân chia tiếp theo, với tỷ lệ phục hồi được báo cáo khoảng 73,4-89,6%.7
-
- Tác động đến kết cục lâm sàng
-
Ý nghĩa lâm sàng của bất thường nhân còn phụ thuộc vào kiểu hình nhân. Trong một nghiên cứu trên 1.314 chu kỳ chuyển đơn phôi nang, phôi 2BI2 đạt tỷ lệ trẻ sinh sống là 56%, cao hơn so với 27% ở phôi 2MONO. Trong khi đó, phôi 2MULTI2 chỉ đạt khoảng 16%.7
Ngoài ra, ở phôi chuyển ngày 2, bất thường nhân cũng liên quan đến việc giảm tỷ lệ trẻ sinh sống, khoảng 11%, so với 20% ở trường hợp bình thường.
Nhìn chung, các bằng chứng hiện tại cho thấy không nên xem tất cả bất thường nhân là một nhóm đồng nhất. Việc đánh giá cần phải dựa trên kiểu hình nhân, mức độ bất thường và bối cảnh động học phát triển của phôi.7
Bất thường nhân là một hiện tượng thường gặp trong giai đoạn phát triển sớm của phôi, phản ánh những sai lệch có thể xảy ra trong quá trình hình thành thoi phân bào, phân ly nhiễm sắc thể và phân chia tế bào. Các bằng chứng từ TLI và PGT-A cho thấy không phải mọi bất thường nhân đều có ý nghĩa tiên lượng giống nhau. Đặc biệt, cần phân biệt hai nhân (2BI) và đa nhân thực sự (2MULTI) khi đánh giá chất lượng và tiềm năng phát triển của phôi.
Trong thực hành IVF, đánh giá hình thái nhân nên được kết hợp với đặc điểm động học và các yếu tố sinh học khác của phôi, thay vì sử dụng bất thường nhân như một tiêu chí loại trừ đơn độc. Việc hiểu rõ cơ chế hình thành và ý nghĩa của từng kiểu hình nhân có thể góp phần cải thiện quá trình lựa chọn phôi và tư vấn lâm sàng, hướng đến mục tiêu cuối cùng là tăng khả năng đạt thai kỳ khỏe mạnh và trẻ sinh sống.
1. Coticchio G, Cimadomo D, Cermisoni GC, et al. The first mitotic division: a perilous bridge connecting the zygote and the early embryo. Hum Reprod. 2023;38(6):1019-1027. doi:10.1093/humrep/dead067
2. The Vienna consensus: report of an expert meeting on the development of ART laboratory performance indicators. Reprod Biomed Online. 2017;35(5):494-510. doi:10.1016/j.rbmo.2017.06.015
3. Ono Y, Shirasawa H, Takahashi K, et al. Shape of the first mitotic spindles impacts multinucleation in human embryos. Nat Commun. 2024;15(1):5381. doi:10.1038/s41467-024-49815-8
4. Coticchio G, Lagalla C, Taggi M, Cimadomo D, Rienzi L. Embryo multinucleation: detection, possible origins, and implications for treatment. Hum Reprod. 2024;39(11):2392-2399. doi:10.1093/humrep/deae186
5. Talbot AL, Alexopoulou E, Kallemose T, Freiesleben NLC, Nielsen HS, Zedeler A. Binucleated embryos at the two-cell stage show higher blastocyst formation rates and higher pregnancy and live birth rates compared to non-multinucleated embryos. Hum Reprod Open. 2022;2022(4):hoac049. doi:10.1093/hropen/hoac049
6. Palmerola KL, Amrane S, De Los Angeles A, et al. Replication stress impairs chromosome segregation and preimplantation development in human embryos. Cell. 2022;185(16):2988-3007.e20. doi:10.1016/j.cell.2022.06.028
7. Sayed S, Reigstad MM, Petersen BM, Schwennicke A, Hausken JW, Storeng R. Nucleation status of Day 2 pre-implantation embryos, acquired by time-lapse imaging during IVF, is associated with live birth. Cowley H, ed. PLOS ONE. 2022;17(9):e0274502. doi:10.1371/journal.pone.0274502
8. Ciray HN, Campbell A, Agerholm IE, et al. Proposed guidelines on the nomenclature and annotation of dynamic human embryo monitoring by a time-lapse user group. Hum Reprod. 2014;29(12):2650-2660. doi:10.1093/humrep/deu278